
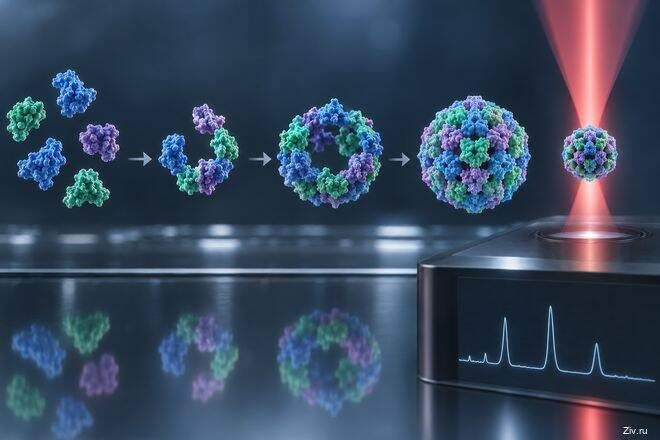
Сборка белковой оболочки похожа на задачу с тысячами допустимых ходов, в которой система почти всегда приходит к одной форме. Исследователи совместили масс-фотометрию с одномолекулярной ловушкой и проследили, как отдельная вирусоподобная частица набирает субъединицы в реальном времени. Живого вируса и заражения в опыте не было.
Вес вместо цветной метки
Масс-фотометрия регистрирует рассеяние света частицей у поверхности и по интенсивности оценивает её массу. Это позволяет различать комплексы с разным числом белковых субъединиц без флуоресцентных меток, которые способны менять взаимодействия. Сначала авторы наблюдали распределение множества частиц в растворе и увидели, какие промежуточные размеры встречаются чаще.
Но снимок популяции не показывает порядок событий. Поэтому пентамерное белковое кольцо закрепили на поддерживаемой липидной мембране в микроскопической области. После добавления свободных тримерных блоков прибор непрерывно измерял массу одного растущего комплекса. В анализ вошли 25 таких траекторий; съёмка шла с высокой частотой, а отдельные наблюдения были ограничены несколькими минутами.
Почему сборка не перебирает все варианты
На графиках масса росла не плавно, а ступенями. Частица задерживалась в состояниях, соответствующих геометрически замкнутым промежуточным структурам. Слабые обратимые контакты позволяли неудачно присоединившимся блокам уйти, а появление нового замкнутого фрагмента стабилизировало конструкцию.
Самой долгой оказалась начальная пауза: к пентамерному кольцу должны были почти одновременно и в правильной конфигурации присоединиться три тримера. После первого замыкания для следующего геометрического шага требовалось меньше совпадений, и рост ускорялся. Авторы описывают процесс как последовательность переходов к ограниченному набору устойчивых форм, а не как перебор всех мыслимых комбинаций.
Модель капсида, а не фильм о настоящем вирусе
В работе использована искусственная белковая система mi3, собирающаяся в симметричную полую оболочку. Она удобна для проверки физических принципов, но не воспроизводит полный жизненный цикл вируса, взаимодействие с генетическим материалом и клеткой. Кроме того, самые быстрые присоединения и отсоединения были ниже чувствительности метода, а время наблюдения ограничивало оценку долгоживущих состояний.
Поэтому эксперимент не доказывает универсальный маршрут для всех вирусных оболочек. Он даёт измеряемую схему, на которой можно проверять модели самосборки: массу каждого заметного состояния, время ожидания и связь между геометрией и устойчивостью.
Зачем видеть промежуточные состояния
Читайте также: Как белковые сборки превращают в переносчики РНК
Ошибки самосборки важны не только для вирусологии. По сходным принципам возникают белковые наноклетки и другие многокомпонентные молекулярные машины. Понимание того, где система задерживается и как выходит из ловушки, может помочь проектировать наноматериалы или искать уязвимые этапы образования капсида. Это направление для будущих разработок, а не продемонстрированная противовирусная терапия.